タンパク質の構造はどう決まる?一次から四次構造の仕組みと最新科学を徹底解説
生命活動のあらゆる局面で主役を演じるタンパク質。筋肉や皮膚の構成成分から、体内の化学反応を司る酵素、外敵と戦う抗体に至るまで、その多彩な機能はすべて「立体構造」という物理的な形状によって決定づけられています。アミノ酸が一列に並んだただの鎖が、なぜ自発的に精密な3次元マシンへと組み上がるのでしょうか。
構造生物学の世界は、2024年のノーベル化学賞を受賞したタンパク質構造予測AI「AlphaFold」の登場や、高分解能を誇るクライオ電子顕微鏡の普及によって劇的なパラダイムシフトを迎えました。本稿では、基礎となる一次構造から四次構造までの階層的な仕組み、立体配置を支える化学結合のネットワーク、そして構造変化がもたらす生化学的機能の真髄について、2026年現在の最新知見を交えて徹底解説します。
📌 【この記事の重要ポイントまとめ】
- 要点1:タンパク質の立体構造は、一次構造(アミノ酸配列)の遺伝情報をもとに、二次・三次・四次構造へと段階的に折りたたまれて完成する。
- 要点2:アルファヘリックスやベータシートを形作る水素結合、三次構造を固定するジスルフィド結合など、複数の化学結合が生化学タンパク質機能を支えている。
- 要点3:AlphaFoldやクライオ電子顕微鏡の進化により、構造の解明スピードは飛躍的に向上し、創薬や疾患メカニズムの解明に革新をもたらしている。
【基本構造の全貌】一次から四次構造の違いと立体配置が決まる仕組み
タンパク質の立体構造は、まったくのランダムに形成されるわけではありません。極めて厳密なルールに従い、4つの階層構造を経て組み立てられます。生命の設計図であるDNAの情報が、どのようにして機能的な立体へと変換されるのか、そのプロセスを順を追って紐解いていきます。
一次構造:すべての土台となるアミノ酸配列とペプチド結合
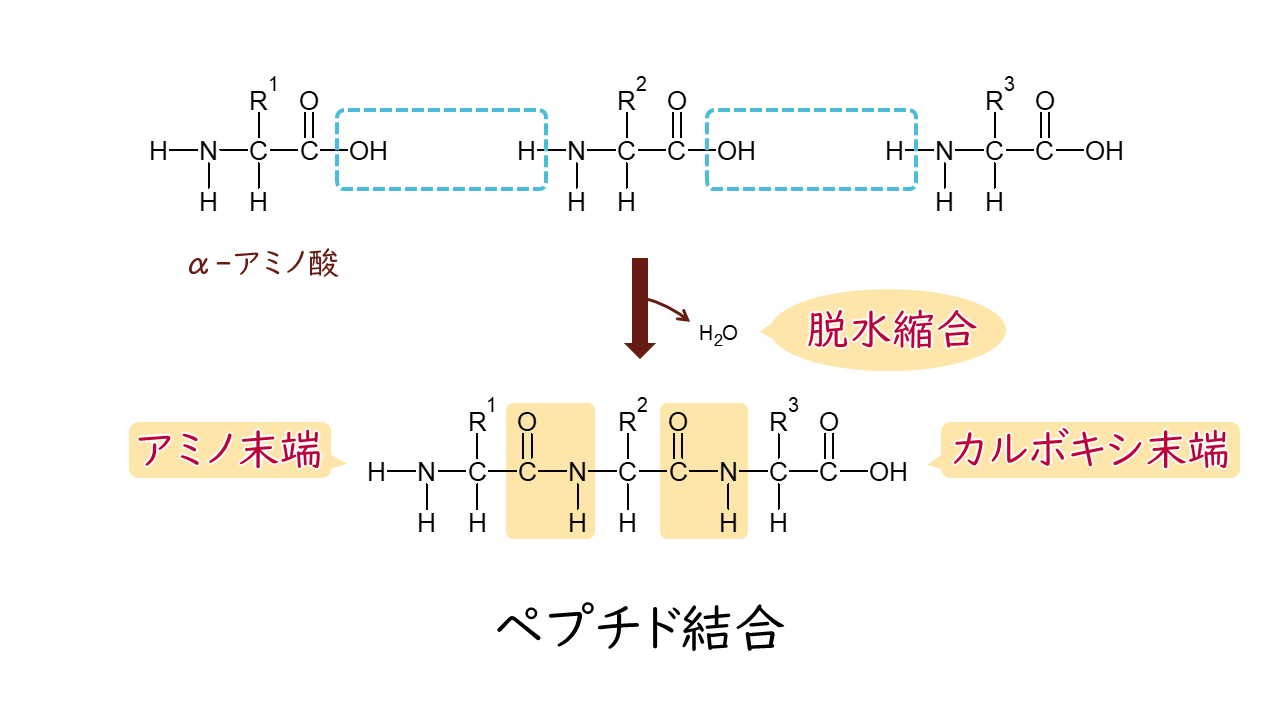
タンパク質の最も基本的な姿がタンパク質一次構造です。これは、生体を構成する20種類のアミノ酸が、遺伝暗号の指定に従って一列に連なった鎖状の構造を指します。アミノ酸同士をつなぐのは、一方のアミノ基(-NH₂)ともう一方のカルボキシ基(-COOH)から水分子が1つ脱離して形成される強力な共有結合であるペプチド結合です。
「アミノ酸の並び順(アミノ酸配列)」こそが、後述する高次構造の折りたたみ方をすべて決定づける根源的な情報源となります。たった1つのアミノ酸が別のアミノ酸に置き換わっただけでも、立体構造全体が崩壊したり、全く異なる性質を示したりすることがあります(例:鎌状赤血球貧血症など)。
二次構造:局所的な規則正しいパターン「アルファヘリックス」と「ベータシート」
ペプチド鎖が長くなると、主鎖(ペプチド結合の骨格部分)に存在するカルボニル酸素(C=O)とアミド水素(N-H)の間で規則的な水素結合が形成されます。これにより生じる局所的な立体パターンがタンパク質二次構造です。代表的な形状には以下の2つが存在します。
- アルファヘリックス(α-helix):ペプチド鎖が右巻きのらせん状に美しくねじれた構造。3.6アミノ酸ごとに1回転し、らせんの軸と平行に水素結合が架橋されるため、非常に安定した強度としなやかさを持ちます。皮膚のケラチンなどに豊富です。
- ベータシート(β-sheet):ペプチド鎖がジグザグに伸び、隣り合う鎖同士が横並びになって平面のシート状に水素結合で連結された構造。絹のフィブロインなどに多く見られ、引っ張りに強い剛直な特性を示します。
三次構造:1本の鎖が織りなす独自の立体配置
二次構造の要素(αヘリックスやβシート)や不規則なループ領域が、さらに複雑に折りたたまれて形成される全体的な3次元構造がタンパク質三次構造です。ここで主役となるのは、アミノ酸の主鎖ではなく、多様な性質を持つ「側鎖(R基)」同士の相互作用です。
水性環境下において、水になじみにくい疎水性側鎖は内側に集まり(疎水性相互作用)、親水性側鎖は表面に露出します。さらに、プラスとマイナスの電荷を持つ側鎖間の静電相互作用(イオン結合・塩橋)、側鎖同士の水素結合、そしてシステイン残基のチオール基(-SH)同士が酸化されて形成される強固な共有結合であるジスルフィド結合(SS結合)が、三次構造を強固にロックします。この独自のポケットや溝こそが、酵素活性部位や受容体の結合部位となるのです。
四次構造:複数のポリペプチドが結集する複合体
三次構造まで折りたたまれた単一のポリペプチド鎖(サブユニット)が、複数個集まって1つの機能単位を形成した状態をタンパク質四次構造と呼びます。例えば、血液中で酸素を運搬するヘモグロビンは、2種類のサブユニットが2個ずつ集まった4量体(α₂β₂複合体)として機能します。各サブユニットが協調的に動くことで、効率的な酸素の結合と放出を可能にしています。

【徹底比較】一次・二次・三次・四次構造の特徴と結合様式の違い
4つの階層構造の違いを、関与する化学結合や生体内の具体例とともに整理しました。階層が上がるにつれて結合の種類が多様化し、複雑な立体配置が実現されていることが分かります。
| 構造の階層 | 主な形成要因・結合様式 | 代表的な形態・具体例 | 機能上の役割・特徴 |
|---|---|---|---|
| 一次構造 | ペプチド結合(強い共有結合) | アミノ酸配列(インスリンのアミノ酸鎖など) | 高次構造のすべての折りたたみを決定する基本設計図 |
| 二次構造 | 主鎖間の水素結合 | アルファヘリックス、ベータシート | 局所的な強度、柔軟性、規則的な骨格の形成 |
| 三次構造 | 疎水性相互作用、水素結合、イオン結合、ジスルフィド結合 | ミオグロビン、リゾチームなどの球状タンパク質 | 酵素の活性中心や受容体結合部位など固有の機能を創出 |
| 四次構造 | 非共有結合(疎水性相互作用・静電引力など)、一部共有結合 | ヘモグロビン(4量体)、抗体(免疫グロブリン) | アロステリック効果などサブユニット間の高度な情報伝達 |
【生化学の核心】タンパク質の変性と機能破綻|熱やpHで何が起きるのか
精密に組み上げられたタンパク質の立体構造ですが、その維持に関わる結合の多くは熱運動に弱い非共有結合です。そのため、外部環境の急激な変化によって立体構造が崩れ、本来の機能を失ってしまう現象をタンパク質の変性と呼びます。
変性を引き起こす主な要因には、以下のようなものがあります。
- 熱による変性:温度が上昇すると分子の熱運動が激しくなり、水素結合や疎水性相互作用が切断されます。生卵を加熱すると白身が白く固まる現象は、オボアルブミンなどの球状タンパク質がほどけ、露出した疎水性部分同士が無秩序に絡み合って不溶性の沈殿を作る典型例です。
- pHの変化(強酸・強塩基):極端なpH環境下では、アミノ酸側鎖の電離状態(プロトン化・脱プロトン化)が変化し、立体構造を支えていたイオン結合や水素結合が破壊されます。
- 変性剤や界面活性剤:尿素や塩酸グアニジン、SDS(ドデシル硫酸ナトリウム)などは、水和構造を乱したり疎水結合部に割り込んだりして構造をほどきます。
生体内では、変性したタンパク質が異常凝集して細胞毒性を示すのを防ぐため、分子シャペロン(熱ショックタンパク質など)と呼ばれる救済システムが常に働いています。シャペロンは、折りたたみに失敗したタンパク質をキャッチし、正常な立体構造へとリフォールディング(再折りたたみ)させる極めて重要な役割を担っています。

【実態検証】AlphaFoldとクライオ電子顕微鏡が変えた構造生物学の最前線
かつてタンパク質の立体構造を原子レベルで決定するには、過酷な結晶化実験とX線結晶構造解析に数か月から数年の歳月を費やすのが通例でした。しかし、近年のバイオインフォマティクスと顕微解析技術の飛躍的進化が、この常識を完全に覆しました。
Google DeepMind社が開発したAlphaFold(2024年発表のAlphaFold3を含む進化版)は、既知の構造データとアミノ酸配列の共進化情報をディープラーニングで解析し、未知のタンパク質の三次・四次構造を実験値に迫る極めて高い精度で予測することに成功しました。この功績により、開発者らは2024年のノーベル化学賞に輝いています。
一方で、実験科学の現場を支えているのがクライオ電子顕微鏡(Cryo-EM)です。生体分子を水溶液ごと急速凍結(ガラス化)し、極低温下で電子顕微鏡観察を行うことで、結晶化が極めて困難だった膜タンパク質や巨大なリボソーム、ウイルス複合体の立体構造が、天然に近い状態で次々と可視化されています。
「予測AI」と「クライオ電顕」の融合により、2026年現在の新薬開発(構造ベース創薬:SBDD)は、標的タンパク質が疾患に関連してどのように動くのかをコンピューター上でシミュレーションしながらピンポイントで阻害剤を設計する時代へと本格移行しています。
一般に知られていない盲点と誤解|「固定された立体構造」神話の崩壊
生化学の教科書を開くと、タンパク質はまるでプラスチックの模型のように「決まったひとつの形」として描かれがちです。しかし、実際の生体内におけるタンパク質は、常に動的にゆらいでいます。
特に近年の研究で大きな注目を集めているのが、決まった立体構造を持たない天然変性タンパク質(Intrinsically Disordered Proteins: IDP)の存在です。ヒトのタンパク質の3割以上が、全体または一部に定型構造を持たない変性領域を有しているとされています。
これらのタンパク質は、柔軟な紐のようにゆらぎながら細胞内を漂い、標的分子と結合した瞬間に初めて特定の構造をとる(誘導適合)性質を持ちます。この柔軟性こそが、シグナル伝達や遺伝子発現調節、液-液相分離(LLPS)による膜のない細胞小器官の形成など、極めて高度な生体制御を可能にしているのです。「ひとつの配列にひとつの硬い立体構造」という固定観念は、現代の構造生物学ではもはや過去のものとなりつつあります。
【プロの結論】構造生物学の知見を活用すべき領域と向き合い方
タンパク質の立体構造に関する深い理解は、専門の研究者だけでなく、医療、バイオテクノロジー、ヘルスケア産業に関わるすべての人にとって必須のリテラシーとなっています。どのような分野でこの知見が真価を発揮するのか、その判断基準を提示します。
積極的に学ぶべき対象・活かせる領域
- 創薬・製薬・バイオベンチャー:抗体医薬品の開発、低分子化合物のドッキングシミュレーション、標的タンパク質分解誘導薬(PROTAC)などの次世代モダリティ開発において、構造解析とAI予測のスキルは不可欠です。
- 分子標的薬・ゲノム医療を扱う医療従事者:がんの変異遺伝子がタンパク質のどの部位に位置し、薬剤感受性や耐性にどう影響するかを立体構造ベースで理解することで、より精密な個別化医療の実践が可能になります。
- バイオインフォマティクス・計算科学分野:物理学や情報科学の知見をタンパク質の分子動力学(MD)シミュレーションに応用する領域は、世界的に極めて高い需要が存在します。
過度な単純化に注意すべきケース
- 「AI予測=万能」という過信:AlphaFoldなどの予測精度は驚異的ですが、リン酸化や糖鎖付加といった翻訳後修飾(PTM)の影響、リガンド結合に伴う大きな動的構造変化については、依然としてウェットな生化学実験(クライオ電顕やNMR等)による検証が欠かせません。
【タンパク質 の 構造】に関するよくある質問(FAQ)
Q1:タンパク質の一次構造(アミノ酸配列)だけで、なぜ三次構造の形が決まるのですか?
A1:アンフィンセンのドグマ(熱力学的仮説)として知られる原理に基づきます。アミノ酸配列が決まると、水性環境下で最も自由エネルギーが低く安定な配置(疎水部を内側に隠し、水素結合や静電引力を最大化する形)が物理化学的に自発的に定まるためです。生体内ではシャペロンがその折りたたみを補助します。
Q2:アルファヘリックスとベータシートの違いは見た目以外に何がありますか?
A2:主鎖内の水素結合の張り巡らされ方が異なります。αヘリックスは1本の鎖の中で進行方向に沿ってらせん状に結合が形成されるため弾力性と柔軟性があり、βシートは隣り合う鎖同士が横並びで平面状に結合するため引っ張りに対して剛直で強靭な構造を持ちます。
Q3:加熱して変性したタンパク質は、冷やせば元に戻りますか?
A3:小さな単量体タンパク質などを除き、多くの場合、完全には元に戻りません(不可逆変性)。熱によってほどけたペプチド鎖の疎水性部分が無秩序に衝突し、不溶性の凝集体を作ってしまうためです。ただし、一部の変性タンパク質は分子シャペロンの働きによってATPのエネルギーを消費しながら再生されます。
まとめ:タンパク質の立体構造理解が切り拓くバイオテクノロジーの未来
タンパク質は、20種類のアミノ酸がペプチド結合で連なる一次構造から始まり、水素結合による規則的な二次構造、側鎖の化学的相互作用が織りなす三次構造、そして複数分子が組み合わさる四次構造へと至ることで、生命現象を司る精密な分子機械として完成します。
アミノ酸配列という「1次元の情報」が、いかにして空間的な「3次元の機能」へと変換されるのか。その謎は、AlphaFoldをはじめとする構造予測AIやクライオ電子顕微鏡の登場によって、かつてないスピードで解明されつつあります。生命の基本原理であるタンパク質構造の理解は、不治の病に対する画期的な創薬や、人工タンパク質による環境エネルギー問題の解決など、これからのバイオテクノロジーを力強く牽引していくことでしょう。 (出典: タンパク質 の 構造(Yahoo!ニュース))
SEOライティングとマーケティング戦略の専門家。分かりやすい解説記事で定評があります。
